
289. ГОРМОНАЛЬНАЯ РЕГУЛЯЦИЯ МЕТАБОЛИЧЕСКИХ ПРОЦЕССОВ
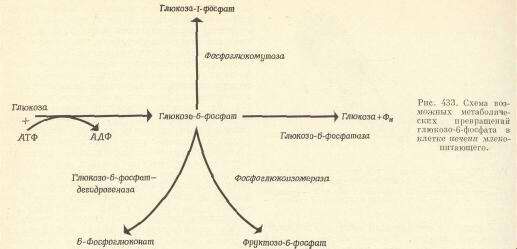
Для нормальной жизнедеятельности сложного организма, например человека, необходима, помимо всего прочего, координация между множеством возможных метаболических реакций. Скорость каждой из этих реакций должна повышаться или понижаться в ответ на те или иные изменения в окружающей среде. Частично эти скорости определяются кинетическими свойствами ферментов: они повышаются или понижаются в соответствии с изменениями концентраций субстратов и кофакторов. Например, глюкозо-6-фосфат может превращаться в печени в глюкозо-1-фосфат, фруктозо-6-фосфат, 6-фосфоглюконовую кислоту или свободную глюкозу (рис. 433); каждую из этих реакций катализирует особый фермент, и скорость каждой из них зависит от сродства соответствующего фермента к глюкозо-6-фосфату и от максимальной скорости данной ферментативной реакции при полном насыщении фермента субстратом. Одно лишь изменение концентрации глюкозо-6-фосфата приведет не просто к сдвигу скоростей метаболических реакций, но и к изменению самого направления процессов обмена. При малых концентрациях глюкозо-6-фосфата субстратом будет насыщен только один фермент — глюкозо-6-фосфатдегидрогеназа (обладающая наибольшим сродством к субстрату), и имеющийся в небольшом количестве глюкозо-6-фосфат почти весь будет превращаться в 6-фосфоглюконовую кислоту. При этой низкой концентрации субстрата глюкозо-6-фосфатаза, сродство которой к нему очень невелико, вряд ли вообще будет действовать, и лишь ничтожная часть глюкозо-6-фосфата сможет превратиться в свободную глюкозу. При высоких концентрациях глюкозо-6-фосфата, когда все ферменты насыщены субстратом, направление метаболических процессов будет уже определяться соотношением максимальных скоростей реакций всех четырех ферментов. Так как максимальная скорость реакции, катализируемой глюкозо-6-фосфатазой, особенно велика, то при высоких концентрациях глюкозо-6-фосфата большая часть будет превращаться в глюкозу.
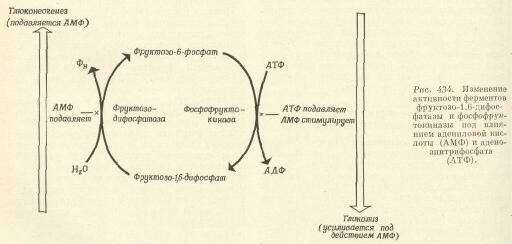
Помимо концентраций субстрата и кофакторов, на активность многих ферментов влияет также присутствие других молекул. Например, адениловая кислота (АМФ) повышает, а АТФ тормозит активность фосфофруктокиназы, превращающей фруктозо-6-фосфат в фруктозо1,6-дифосфат (рис. 434). В то же время АМФ тормозит активность фруктозодифосфатазы — фермента, катализирующего обратное превращение фруктозо-1,6-дифосфата в фруктозо-6-фосфат. Противоположное влияние АМФ на эти два фермента позволяет избежать одновременного действия их обоих, которое приводило бы к бесполезной трате АТФ в результате его циклического гидролиза. Эти и подобные им взаимодействия, изменяющие активность ферментов, очень сложны, и рассмотрение их не входит в наши задачи; мы упомянули о них лишь затем, чтобы дать представление о многообразии внутриклеточных механизмов, которые могут регулировать метаболические процессы.
На эти регулирующие факторы, определяемые свойствами самих ферментов и изменением их активности под действием метаболитов, накладываются влияния иного рода, обусловленные специфическими гормонами. Некоторые гормоны — тироксин, инсулин, гормон роста и кортизол — оказывают глубокое воздействие на метаболизм самых различных тканей; кроме того, они участвуют в координации между многочисленными метаболическими реакциями, которые могут протекать в этих тканях.
Большинство позвоночных, например, не могут достигнуть размеров и формы, свойственных нормальной взрослой особи, при отсутствии тироксина. По-видимому, рост скелета регулируется действием тироксина и гормона роста. Хорошо известна роль тироксина в регуляции метаморфоза у амфибий; у других позвоночных этот гормон также влияет на рост и дифференцировку, хотя и не столь явным образом. Тироксин и трииодтиронин повышают общую интенсивность обмена и потребление кислорода почти во всех органах и тканях тела. Имеются данные о более чем 100 ферментах, активность которых повышается после введения тироксина. Поскольку тироксин увеличивает потребление кислорода, а кислород используется главным образом в митохондриях, естественно возникло предположение, что первичный эффект тироксина состоит в изменении структуры и функции митохондрий. И в самом деле, изолированные митохондрий под действием этого гормона набухают. Высокие концентрации тироксина могут вызывать «разобщение» процессов дыхания и фосфорилирования, так что энергия освобождается в виде тепла, вместо того чтобы сохраняться в форме макроэргических фосфатных связей (~Ф); однако это явление, вероятно, не имеет отношения к обычному физиологическому действию тироксина.
Повышение уровня основного обмена у больных с гиперфункцией щитовидной железы нельзя объяснить влиянием тироксина на какой-либо один метаболический процесс.
Инсулин регулирует обмен не только углеводов, но также белков и липидов. Он облегчает проникновение глюкозы в клетки мышц и жировой ткани и, кроме того, повышает активность ряда ферментов, например глюкокиназы и гликогенсинтетазы. Под действием инсулина усиливается поглощение клетками аминокислот и включение их в белки. Вместе с тем инсулин ускоряет превращение глюкозы в жирные кислоты и тормозит гидролиз триглицеридов в жировой ткани. При недостатке инсулина, например при диабете, периферические ткани не могут использовать глюкозу и мобилизовать жирные кислоты для участия в обмене веществ. Жирные кислоты не расщепляются до конца, и происходит накопление кислых продуктов метаболизма — кетоновых тел, что ведет к ацидозу. При тяжелом диабете образование кетоновых тел происходит столь интенсивно, что организм не в состоянии выводить их, и тогда нарастающий ацидоз может привести к коме и к смерти.
Антагонистом инсулина в отношении действия на обмен веществ
является кортизол. Он вызывает мобилизацию аминокислот из периферических
тканей и ускоряет глюконеогенез —
превращение углеродных цепей аминокислот в глюкозу и гликоген.
Кортизол тормозит использование глюкозы скелетными мышцами и другими
периферическими тканями и ускоряет мобилизацию жирных кислот, повышая тем
самым образование кетоновых тел. Если у животного, страдающего диабетом,
удалить надпочечники (или гипофиз), то вероятность развития у него
смертельного ацидоза значительно уменьшится. Кортизол обладает выраженным
противовоспалительным действием, но как это действие связано с его
метаболическими эффектами, неясно.
Гормон роста оказывает весьма многообразное воздействие на ткани тела, способствуя поступлению аминокислот в клетки и усиливая синтез белков. Он повышает синтез ДНК и РНК в печени и мышцах и образование коллагена и мукополисахаридов в соединительной ткани и коже. При недостатке гормона роста чувствительность организма к инсулину повышается (данная доза инсулина снижает концентрацию глюкозы в крови сильнее, чем в норме). Содержание мочевины и аминокислот в крови под влиянием гормона роста уменьшается, что отражает усиленное поглощение и использование аминокислот для синтеза белков. Гормон роста понижает скорость превращения азота аминокислот в мочевину; он стимулирует мобилизацию жира из жировой ткани и повышает концентрацию жирных кислот в плазме крови. Действие этого гормона во многих отношениях противоположно действию инсулина.


