
285. СЛОЖНЫЕ СИСТЕМЫ УПРАВЛЕНИЯ: РЕГУЛЯЦИЯ ЭСТРАЛЬНОГО И МЕНСТРУАЛЬНОГО ЦИКЛОВ
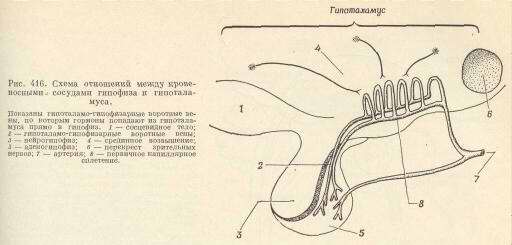
Для того чтобы могло произойти оплодотворение и зачатие, яйцо должно выйти из яичника в такое время, когда вероятность присутствия в яйцеводе сперматозоидов достаточно велика и когда внутренняя выстилка матки — эндометрий — находится в состоянии, благоприятном для имплантации и развития оплодотворенного яйца. Координацию этих событий во времени осуществляют целых восемь гормонов при участии ряда процессов, происходящих в центральной нервной системе. Три из этих гормонов — специфические факторы, выделяемые гипоталамусом и поступающие по воротной системе кровеносных сосудов гипофиза в его переднюю долю (рис. 416). Воротная система начинается сетью капилляров в срединном возвышении у основания гипоталамуса; они сливаются в сосуды, которые проходят через ножку гипофиза в его переднюю долю, где образуют вторую сеть капилляров и синусоидов. Переносимые по этим сосудам релизингфакторы (РФ) представляют собой короткие пептиды, каждый из которых вызывает секрецию соответствующего белкового гормона передней доли гипофиза — фолликулостимулирующего (ФСГ), лютеинизирующего (ЛГ) или лютеотропного (ЛТГ).
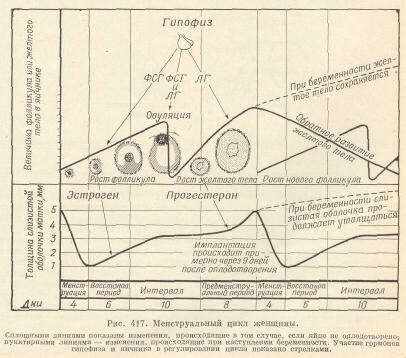
Фолликулостимупирующий гормон действует на яичник и побуждает к развитию некоторые из его первичных лицевых фолликулов (рис. 417). Клетки, окружающие яйцо, быстро размножаются и начинают выделять эстрадиол. Второй гормон гипофиза — лютеинизирующий — стимулирует дальнейший рост фолликула, и особенно большое усиление секреции этого гормона, возможно в сочетании с выделением большой порции фолликулостимулирующего гормона, приводит к разрыву фолликула и выходу яйца: происходит так называемая овуляция. Оставшиеся клетки фолликула под действием лютеинизирующего и лютеотропного гормонов увеличиваются в размерах, становятся желтоватыми и жироподобными на вид и образуют на месте бывшего фолликула желтое тело. Клетки желтого тела выделяют прогестерон и эстрогены. У человека желтое тело обычно сохраняется в течение примерно двух недель, а затем, если не произошло оплодотворения, дегенерирует.
Главный эстроген, выделяемый яичником, — эстрадиол — вызывает развитие характерных женских половых
признаков и участвует в регуляции изменений, связанных с эстральным
или менструальным циклом. В период полового созревания эстрадиол
стимулирует рост матки за счет увеличения как числа,
так и размеров образующих ее мышечных клеток. Рост влагалища, развитие срамных губ, клитора и
других наружных половых частей; рост волос на лобке, расширение таза и
развитие его костей по женскому типу; рост грудных желез, размножение
железистых клеток в них и, наконец, отложение жира на бёдрах — все эти
признаки, характеризующие созревание женского организма, обусловлены
действием эстрадиола. Рост слизистой оболочки матки
(эндометрия) в начале пролиферативной фазы каждого менструального цикла также
контролируется эстрадиолом (рис. 417).
Прогестерон — другой женский половой гормон — мало влияет
на формирование женских половых признаков, но играет важную роль в стимуляции
развития эндометрия и в подготовке его к имплантации оплодотворенного яйца;
это происходит во время второй, секреторной, фазы менструального цикла. В
клетках эндометрия накапливаются жиры и гликоген; развиваются железы,
выделяющие питательную жидкость; кровеносные сосуды растут, удлиняясь и
становясь извилистыми. Кроме того, прогестерон подготавливает молочные железы
к выделению молока, усиливая секре-
торную активность железистых клеток.
У самок большинства видов млекопитающих половое влечение появляется лишь в определенные периоды, и только в это время самка подпускает самца для спаривания. В этот период, называемый эструсом или течкой, создаются наилучшие условия для оплодотворения яйцеклетки. У большей части диких животных течка наступает один раз в год, у собак и кошек — два или три раза в год, а у крыс и мышей эструс повторяется через каждые пять дней. Этот период сопровождается повышенным половым влечением, овуляцией и изменениями слизистой матки и влагалища. После эструса эндометрий утолщается и в нем сильно развиваются железы и кровеносные сосуды, что создает оптимальные условия для имплантации зародыша.
Менструальный цикл приматов характеризуется периодами кровотечений, называемых менструациями и обусловленных дегенерацией и отторжением верхнего слоя эндометрия. Овуляция происходит примерно в середине промежутка между двумя менструациями. У приматов в отличие от других млекопитающих нет или почти нет циклических колебаний полового влечения, и половой акт возможен у них в любую фазу менструального цикла.
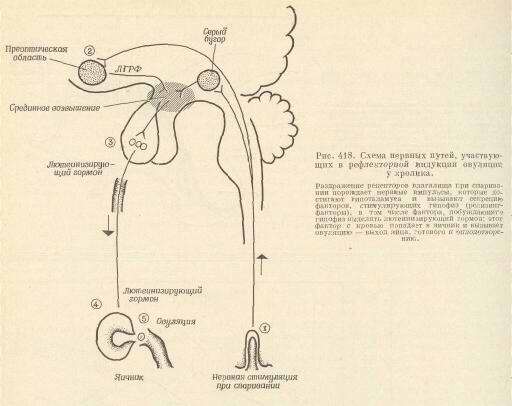
Как в эстральном, так и в менструальном цикле ключевым моментом является овуляция — выход яйца из яичника. Некоторым млекопитающим (кролику, кошке, хорьку, норке) свойственна «рефлекторная» овуляция: она происходит у них под действием нервных импульсов, связанных со спариванием. Возможно, что такого рода прямым сопряжением овуляции со спариванием объясняется хорошо известная плодовитость кроликов. У кролика, кошки и низших обезьян овуляцию можно вызвать путем электрического раздражения определенных участков гипоталамуса — серого бугра и преоптической области. У кролика стимуляция нервной системы при спаривании приводит к выделению гипоталамусом фактора, который, поступая по системе воротных сосудов в переднюю долю гипофиза, вызывает резкое повышение («волну») секреции лютеинизирующего гормона. В результате воздействия этого гормона на яичник яйцевой фолликул разрывается и яйца освобождаются (рис. 418).
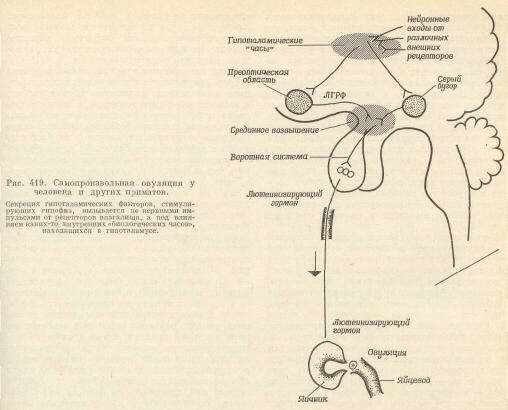
Для другой, более обширной группы млекопитающих характерна спонтанная овуляция, не зависящая от спаривания; у этих животных на время и частоту овуляции влияют факторы внешней среды. Лабораторные крысы, живущие в условиях обычной смены дня и ночи, овулируют между 1.00 и2.30 часа ночи. Если же крыс в течение двух недель или дольше содержать днем в темноте, а ночью при искусственном свете, то время овуляции сдвинегся у них на полсуток. У крыс, содержащихся в условиях непрерывного круглосуточного освещения, овуляции в конце концов прекращаются и развивается стойкое ороговение эпителия влагалища. У приматов, которым свойствен менструальный цикл, — у женщин, у самок человекообразных обезьян и у низших обезьян Старого Света — овуляция происходит самопроизвольно. Разнообразные наблюдения говорят о том, что у женщины ритм менструаций и, вероятно, овуляции подвержен влиянию внешних факторов. Ночные сиделки и стюардессы воздушных линий, пересекающих несколько часовых поясов, часто жалуются на нарушения менструального цикла. По-видимому, у видов со спонтанной овуляцией в гипоталамусе имеются какие-то зависимые от света «физиологические часы», порождающие нервный стимул для секреции гипоталамических релизинг-факторов. Эти факторы образуются в нейронах, аксоны которых оканчиваются в срединном возвышении; здесь, в области окончаний аксонов, релизинг-факторы освобождаются, а затем по воротным сосудам поступают в гипофиз. Возникающая в результате этого «волна» секреции лютеинизирующего гормона вызывает в яичнике овуляцию (рис. 419).
Гипофиз вырабатывает и выделяет фолликулостимулирующий и лютеинизирующий гормоны не только у самок, но и у самцов, у которых эти гормоны регулируют развитие и функцию семенников. Гипофиз самца, пересаженный самке после удаления ее собственного гипофиза, способен поддерживать нормальное протекание астрального или менструального цикла. В яичнике, пересаженном кастрированному самцу, развиваются зрелые фолликулы, но овуляции не происходит, так как гипофиз самца не дает периодических «волн» секреции лютеинизирующего гормона. Особенность женского пола — развитие гипоталамических «часов» — определяется на каком-то критическом этапе раннего онтогенеза центральной нервной системы. У развивающегося самца тестостерон подавляет образование такого центра циклической регуляции, тогда как у самок, у которых нет тестостерона, развивается гипоталамический механизм, программирующий периодическую секрецию гонадотропных гормонов, а тем самым и половой цикл. Если самке крысы в любое время между 1-м и 5-м днями жизни впрыснуть тестостерон, то гипоталамические «часы» у нее никогда не начнут функционировать; у такой самки никогда не происходит овуляции, и она находится в состоянии постоянного эструса — как это бывает у крысы в условиях непрерывного освещения.
В регуляции астральных и менструальных циклов участвуют обратные связи двух типов. Точно так же как тироксин или кортизол уменьшает секрецию тиреотропного гормона или АКТГ, концентрация эстрадиола и прогестерона в крови влияет на выделение гонадотропных гормонов, воздействуя либо непосредственно на гипофиз, либо на гипоталамус. Кроме того, судя по некоторым данным, сами гонадотропные гормоны оказывают обратное влияние на гипофиз через гипоталамус, уменьшая секрецию релизинг-факторов.
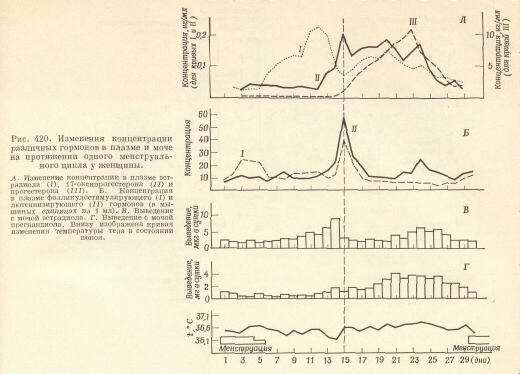
Были разработаны чувствительные и точные методы (радиоиммунологические) количественного определения фолликулостимулирующего и лютеинизирующего гормонов, а также эстрадиола и прогестерона (основанные на связывании специфическими белками). Это позволило измерять концентрацию каждого из этих гормонов в небольших пробах крови, которые брали ежедневно на протяжении всего менструального цикла (рис. 420). Такие определения показывают, что в середине цикла за каких-нибудь 2 или 3 дня концентрация обоих гонадотропных гормонов внезапно резко возрастает и снова падает. Содержание фолликулостимулирующего гормона в крови повышено также в первую неделю пролиферативной фазы, причем этот подъем начинается во время предшествующей менструации и продолжается после ее окончания. Концентрация эстрадиола в крови в первые 10 дней (или около того) пролиферативной фазы остается низкой, а затем резко повышается и достигает максимума примерно в то время, когда начинает возрастать количество лютеинизирующего гормона; потом она начинает падать и к тому времени, когда количество лютеинизирующего гормона достигает максимума, снижается почти до своего низкого исходного уровня. Во время секреторной фазы цикла обычно начинается второй, более широкий и низкий пик концентрации эстрадиола. Содержание прогестерона в крови начинает повышаться примерно во время пика лютеинизирующего гормона и достигает максимума приблизительно 6 дней спустя; оно остается высоким почти до конца цикла, а затем количество прогестерона падает, и это приводит к уменьшению кровоснабжения эндометрия, к гибели клеток его поверхностного слоя и менструальному кровотечению. Менструальные выделения состоят из некротизированных остатков ткани эндометрия, крови и тканевой жидкости; эта смесь постепенно выталкивается из матки в течение 3—5 дней. Базальный слой эндометрия во время менструации сохраняется и служит источником образования нового эпителия и новых желез, развивающихся под действием эстрадиола в постменструальный период.
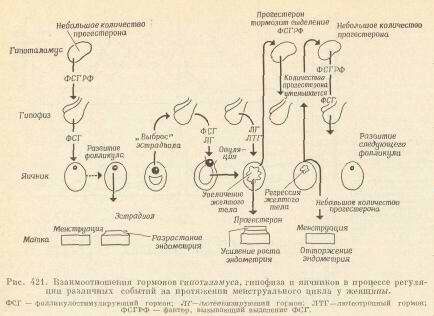
Регуляция менструального цикла происходит, по-видимому, следующим образом (рис. 421):
1. После предыдущей менструации прогестерон, концентрация которого снизилась, перестает оказывать тормозящее действие на гипоталамус, и последний начинает выделять фактор, вызывающий секрецию гипофизом фолликулостимулирующего гормона. Этим можно объяснить повышенное содержание ФСГ в крови в начале цикла.
2. Под действием ФСГ один или несколько фолликулов в яичнике быстро растут и начинают вырабатывать эстрадиол. Выделяемый фолликулярными клетками эстрадиол вызывает пролиферацию клеток эндометрия. Фолликул, достигший определенных размеров, дает нарастающую и спадающую «волну» секреции эстрадиола, которая в свою очередь вызывает такую же волну секреции ФСГ и ЛГ, и эта ответная волна вызывает овуляцию.
3. Лютеинизирующий гормон (во время максимума его секреции) вместе с лютеотропным гормоном, который также выделяется гипофизом, вызывает лютеинизацию фолликулярных клеток (накопление в них желтого пигмента лютеина), образование желтого тела и усиленное выделение им прогестерона.
4. Концентрация прогестерона в крови возрастает и остается высокой на протяжении большей части секреторной фазы цикла. Прогестерон стимулирует дальнейший рост эндометрия и побуждает его железы выделять питательную жидкость.
5. Прогестерон играет также важную роль в торможении секреции фолликулостимулирующего гормона и в предотвращении развития новых яйцевых фолликулов и яиц. В конце концов желтое тело начинает регрессировать, концентрация прогестерона в крови падает и гипоталамус, освобожденный от его тормозящего действия, снова начинает выделять фактор, вызывающий секрецию фолликулостимулирующего гормона. Начинается новый цикл.
Если яйцо оплодотворено и имплантируется в эндометрий, клетки трофобласта и образующейся плаценты начинают выделять хорионический гонад атропин. Этот гормон, обладающий сильной лютеинизирующей и лютеотропной активностью, обеспечивает сохранение желтого тела и стимулирует непрерывное выделение им прогестерона. Примерно к 16-й неделе беременности сама плацента начинает вырабатывать достаточное количество прогестерона, так что желтое тело становится уже ненужным и дегенерирует.
Прогестерон блокирует овуляцию не в результате прямого воздействия на яичник, а подавляя секрецию гипоталамических факторов, побуждающих гипофиз выделять фолликулостимулирующий и лютеинизирующий гормоны. Пероральные (для приема внутрь) противозачаточные средства содержат синтетические эстрогены и прогестины, подобным же образом блокирующие овуляцию. Природные гормоны — эстрадиол и прогестерон — быстро разрушаются в организме, синтетические же гормоны несколько отличаются от них по молекулярной структуре и благодаря этому расщепляются гораздо медленнее. Пероральные противозачаточные средства, подобно естественным гормонам, тормозят выделение лютеинизирующего гормона гипофизом и таким образом предотвращают овуляцию. При приеме этих средств в середине менструального цикла не происходит резкого повышения секреции ЛГ и ФСГ, а потому не происходит и овуляции. Некоторые синтетические прогестины изменяют свойства слизи, выделяемой шейкой матки, что затрудняет прохождение через нее сперматозоидов и уменьшает вероятность оплодотворения яйца.
Яйцо, вышедшее из яичника и направляющееся по яйцеводу к матке, сохраняет способность быть оплодотворенным в течение относительно небольшого срока (около 24 ч). Сперматозоиды, попадающие в женские половые пути в результате полового акта, сохраняют способность к оплодотворению не более 48 ч. Таким образом, период максимальной вероятности зачатия падает на те несколько дней, примерно в середине между двумя менструациями, в которые происходит овуляция. Точно установить гранип,ы этого периода трудно, так как сроки овуляции изменчивы.


